Appearance
短吻犬:名字是狗,身份是小熊猫
在马德里以南25公里的一处低丘上,海泡石矿的剥离面里藏着巴塔洛内斯-1化石点,海拔约720米。约900万年前的晚瓦里斯期,地下水沿管道冲蚀掏空岩层,石膏就地溶蚀出竖井,井底短暂的小湖成了天然陷阱,葬身的动物以食肉目为多,约占个体总数的六成。1991年以来的开采让这处陷阱重见天日,挖出的短吻犬(Simocyon)材料共15件标本,恰好属于两个个体,一老一少,牙齿磨蚀程度截然分明。本文要讲的,就是这两具骨架,以及它们背后一个错了一百多年的名字。
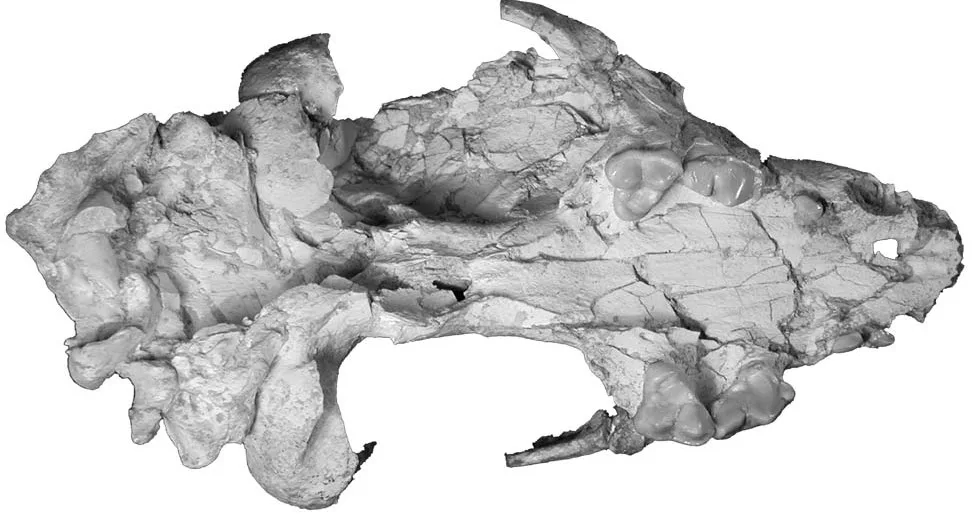
图1 短吻犬(S. batalleri)头骨腹视,标本MNCN B-3620,西班牙巴塔洛内斯-1,晚瓦里斯期,约900万年前;据Peigné et al. 2005
Simocyon是个很老的名字,1858年由德国学者瓦格纳立属,取自希腊语的扁鼻与狗,意思是短吻的狗。在那时的框架里,归入犬类顺理成章——齿系、耳骨和踝骨,都曾让研究者在几个科之间反复挪动。一个多世纪后,腕骨里的一枚籽骨改写了答案:与小熊猫共有这块增大的桡侧籽骨的动物,最近的活亲族不是狗,而是喜马拉雅山间的小熊猫。名字说它是狗,骨头说它是小熊猫科。所以,这个名字与身份的错位已经有多达一百多年。
这一属的模式种出自希腊皮克米的晚中新世骨层。罗特与瓦格纳在1854年描述了那里的化石,瓦格纳1858年为之单独立属,属名Simocyon一直用到今天。巴塔洛内斯的头骨从背视看,吻部短得干脆,腭骨向后突然放宽,眶后突小小地架在额骨上,短吻二字名副其实。皮克米的动物群属于图罗利期第12带,同层还出过三趾马、巨型鬣狗Dinocrocuta和爪兽Ancylotherium。属名立起来之后,归属却换了又换:1949年蒂尼乌斯将之当作犬科的一支做系统研究,此后犬熊科、鼬科、浣熊科都曾收容过这个属,直到颅骨、牙齿与距骨的证据把归属指向小熊猫科。
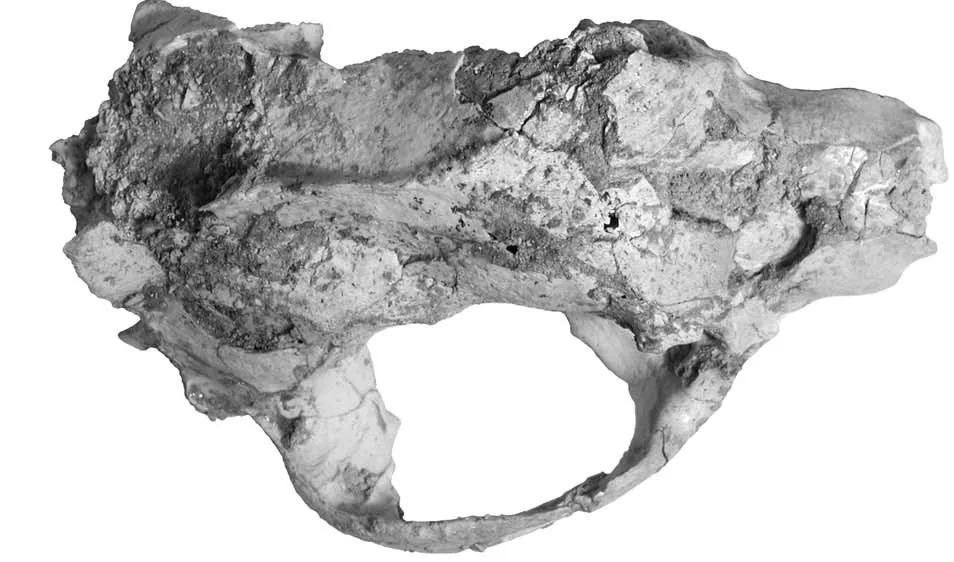
图2 同一属另一件头骨(MNCN B-3458)背视,吻部短促,腭骨向后突然放宽,眶后突架在额骨上;据Peigné et al. 2005
成年短吻犬是美洲狮量级的捕食者,下臼齿长21.0到25.5毫米,2006年的研究给出的描述是半树栖的中度超食肉动物。图3可以直观地看到其体型量级:与它并肩的现生小熊猫,肩高不到它的一半,体重更不在一个数量级上。在小熊猫科的历史里,这个属是罕见的大块头,同科的Actiocyon与Alopecocyon都是小个子。体量与食性往往绑在一起:块头变了,能制住的猎物、能咬碎的骨头都不一样。一头美洲狮大小的小熊猫科动物,要维持这样的块头,食谱就不再是竹子。
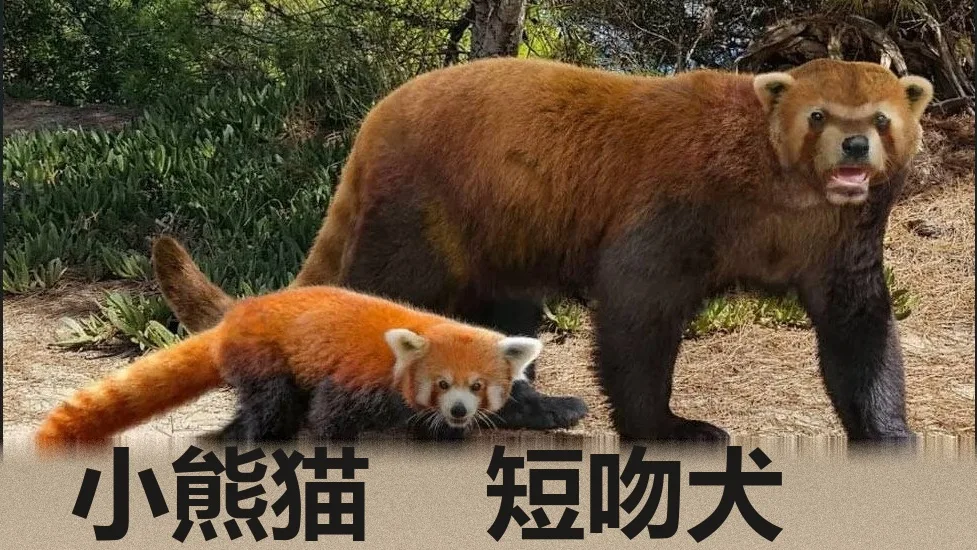
图3 短吻犬与现生小熊猫体型对比,短吻犬为美洲狮量级,小熊猫体重不及它的十分之一;复原图,Roman Uchytel
属名之后的分类史,可以说是一波三折。第一站是犬科:1949年蒂尼乌斯专门研究短吻犬类的来源,论文标题里就写着Canidae。第二站是浣熊科:1997年王晓鸣描述陕西府谷的完整头骨,用颅骨与牙齿证据把短吻犬亚科与小熊猫亚科连成姊妹群,并把这个支系放进浣熊科;1998年巴斯金为北美捕食动物专著写的也是浣熊科。第三站才是小熊猫科:分子证据不支持小熊猫靠近熊或浣熊,腕部籽骨与距骨形态一路都在为它指路,2005年佩涅等人正式把短吻犬亚科归入小熊猫科。三次改判,依据都是新出土的证据。
上齿列是判断食性最直接的依据。图4里P1小得只剩一枚纽扣,P2与P3依次排开,P4陡然变大,齿冠高耸,裂齿功能明确,M1宽阔,专司剪切。2005年的描述说,短吻犬对裂齿剪切的强调超过任何其他小熊猫科或浣熊科成员,指示一种比食草的小熊猫肉食得多的食谱。它也可能咬骨头,有研究者拿它与鬣狗式的碎骨相比;但同一篇描述也指出,短吻犬的碎骨前臼齿远不及北美的borophaginae犬类极端,块头也更小,碎骨未必是主业。这些特征合起来,是一台以剪切为主、兼能碾压的中型碎骨机。
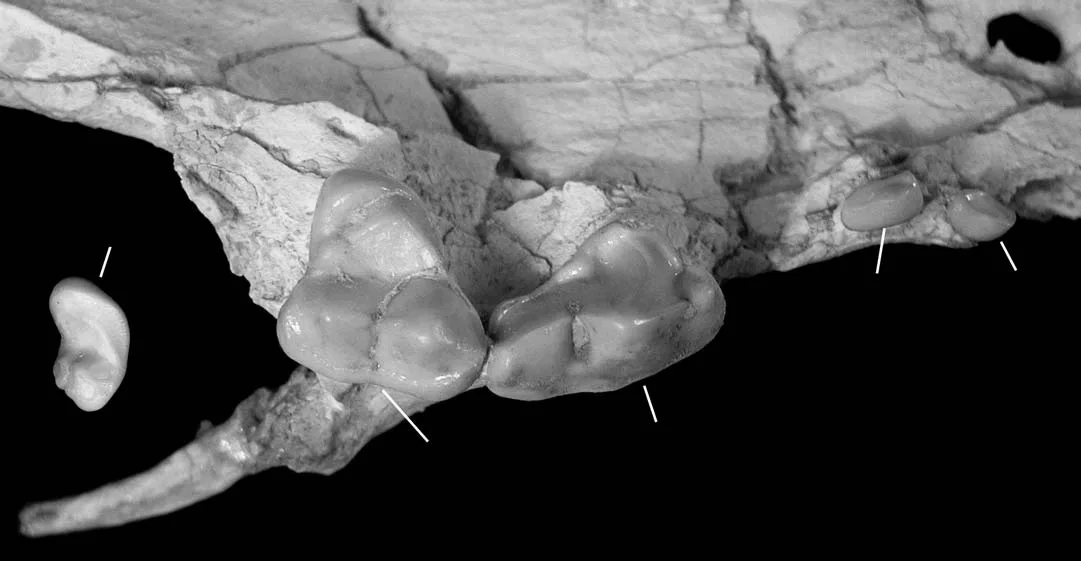
图4 短吻犬右上齿列(MNCN B-3620),P1极小,P4高耸,M1宽阔;据Peigné et al. 2005
齿数的账本比齿形更出格。把各支系的下颌摆在一起看:西班牙的batalleri四枚前臼齿俱全,最小的p1长5.15毫米,单根卵圆;欧洲本土的primigenius只剩p4,长14.24毫米,比batalleri的p4还长出一成半;北美的marshi同样只剩p4,且更为硕大;匈牙利的hungaricus丢了p2,却留着p1与p3;中国的材料到晚上新世仍带着p1到p3。同一个属,前臼齿从四枚减到一枚,减少的次序却各不相同。图5是巴塔洛内斯那件p1至m1俱全的下颌,图6把它和皮克米只剩p4的下颌并排,两者的差别一目了然。
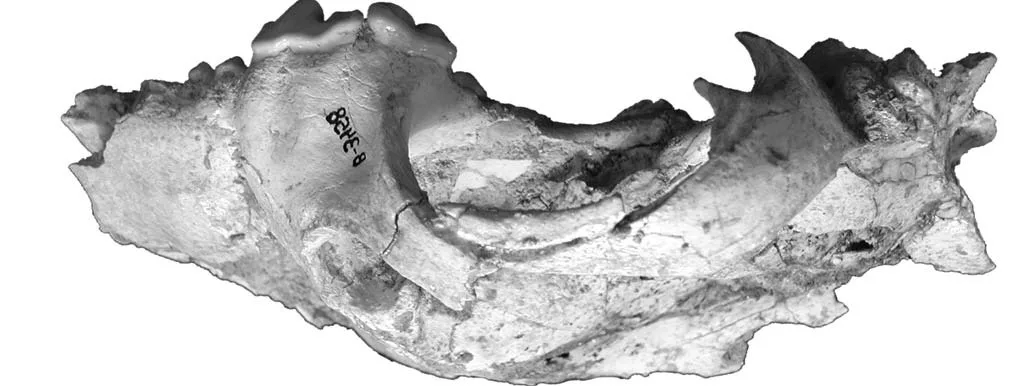
图5 短吻犬(S. batalleri)右下颌,标本MNCN BAT-1-D7-7-2001,西班牙巴塔洛内斯-1,p1至m1俱全,四枚前臼齿虽小却一枚未少;据Peigné et al. 2005
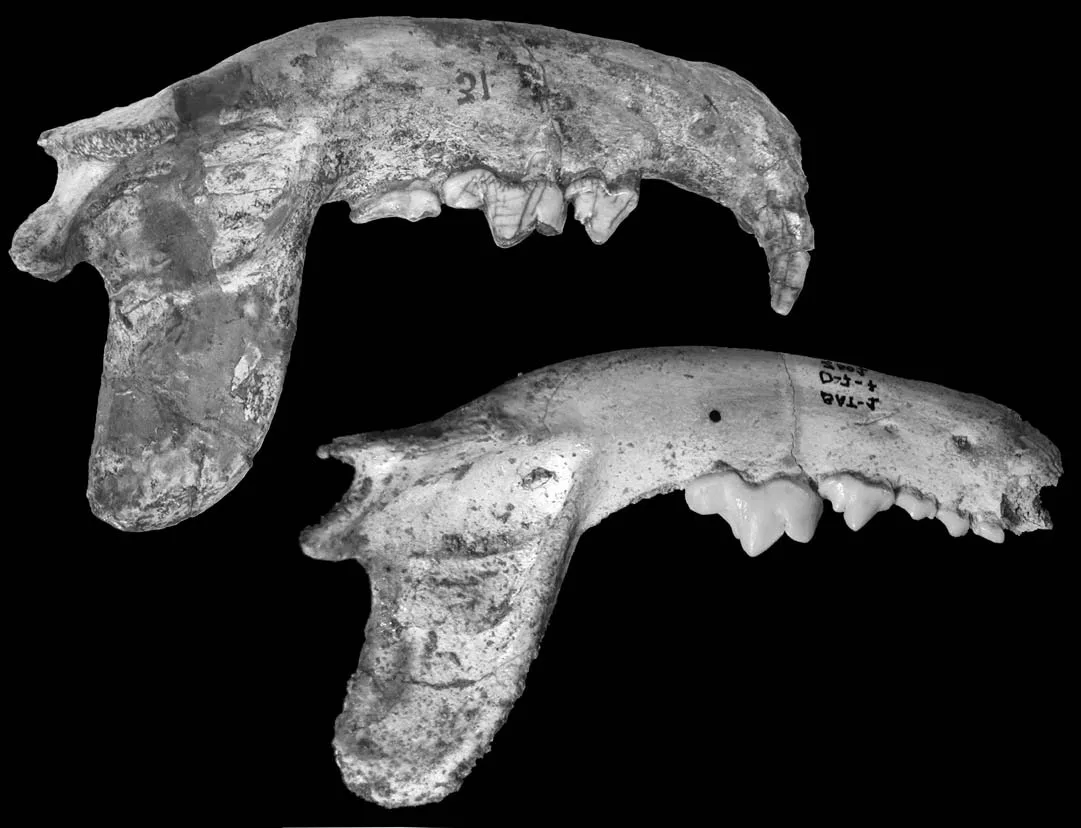
图6 两件下颌对比:上皮克米的S. primigenius(MNHN-PIK 3020),前臼齿只剩p4;下巴塔洛内斯-1的S. batalleri,p1至p4俱全;据Peigné et al. 2005
在巴塔洛内斯-1之前,短吻犬的颅后骨骼几乎是一片空白,已发表材料以头骨和牙齿为主。2008年,萨莱萨等人第一次描述了它的颈椎、腰椎、完整前肢与部分后肢,样本至少包含两个个体。结论是:前肢形态、腰部结构,加上那枚意想不到的籽骨,都强烈指示爬树能力。他们给出的行为模型,是一只通用型食肉兽——主要在陆地上觅食,危急时能上树避险;同层的犬熊科与剑齿虎正是这样的邻居。前臂有高于其他食肉类的旋前旋后能力,肩带肌肉附着面也更大,足以把身体垂直推上树干。
那枚籽骨的分量不止于爬树。短吻犬与小熊猫的腕部都有一块增大的桡侧籽骨,像一根对生的假拇指;大熊猫也有自己的假拇指,却与二者不同源。2006年的研究把三家的籽骨摆在一起:短吻犬的这块骨与小熊猫的接近,支持两个亚科的姊妹关系,也说明假拇指很可能继承自小熊猫科早期成员——那时还没有竹子可抓,它只是爬树时钳住枝条的助力。大熊猫的假拇指后来另起一路,为的是操纵竹子。同一根骨头,三条来路,是脊椎动物里最著名的趋同演化案例之一。
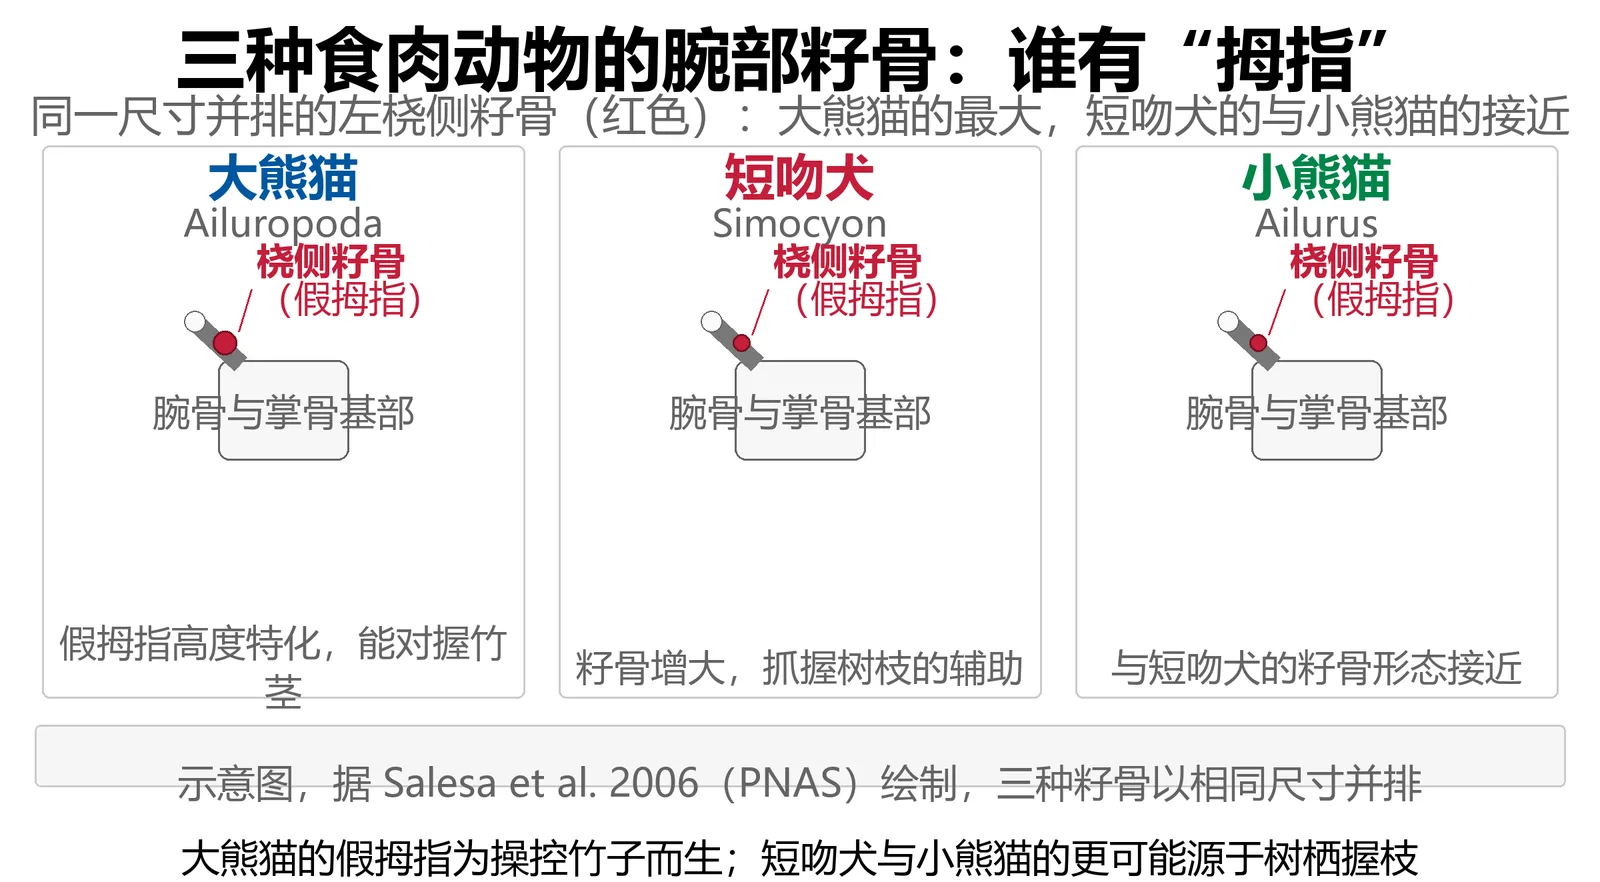
图7 大熊猫、短吻犬与小熊猫腕部桡侧籽骨大小对比,籽骨以红点示意,短吻犬的与小熊猫的接近,大熊猫的更大且不同源;据Salesa et al. 2006
巴塔洛内斯-1的这处天然陷阱形成于sepiolite与灰绿色粘土正在沉积的晚瓦里斯期,食肉目名单有11个种、5个科:猫科、犬熊科、鼬科、鬣狗科,外加小熊猫科自己。大型捕食者在这里密集碰面,短吻犬是其中偏小的一员,靠剪切型齿系对付中型猎物,也有捡拾碎骨的机会,危急时还能上树。它的生态位因此很难塞进现代动物园的任何一个展柜:不是纯粹的猎手,也不是纯粹的食腐者,地面上的追逐与树上的退路都得留着。
短吻犬属的踪迹横跨三大洲。在欧洲,记录从diaphorus的产地埃普尔斯海姆(MN9)一路排到图罗利期末,希腊皮克米、德国多恩-迪尔克海姆、匈牙利查克瓦尔、保加利亚卡利曼齐、西班牙孔库德和乌克兰两处都在其间。北美只有晚中新世末的几点:俄勒冈的响尾蛇组,以及爱达荷与内华达的几处。亚洲出现最早,新疆准噶尔盆地哈拉玛盖组的中中新世材料是全属最早的记录;陕西府谷的完整头骨出自保德期,甘肃临夏的柳树组上部也有分布,这一属在中国跨进了上新世。非洲只有一件牙齿,产自肯尼亚莱姆东戈。
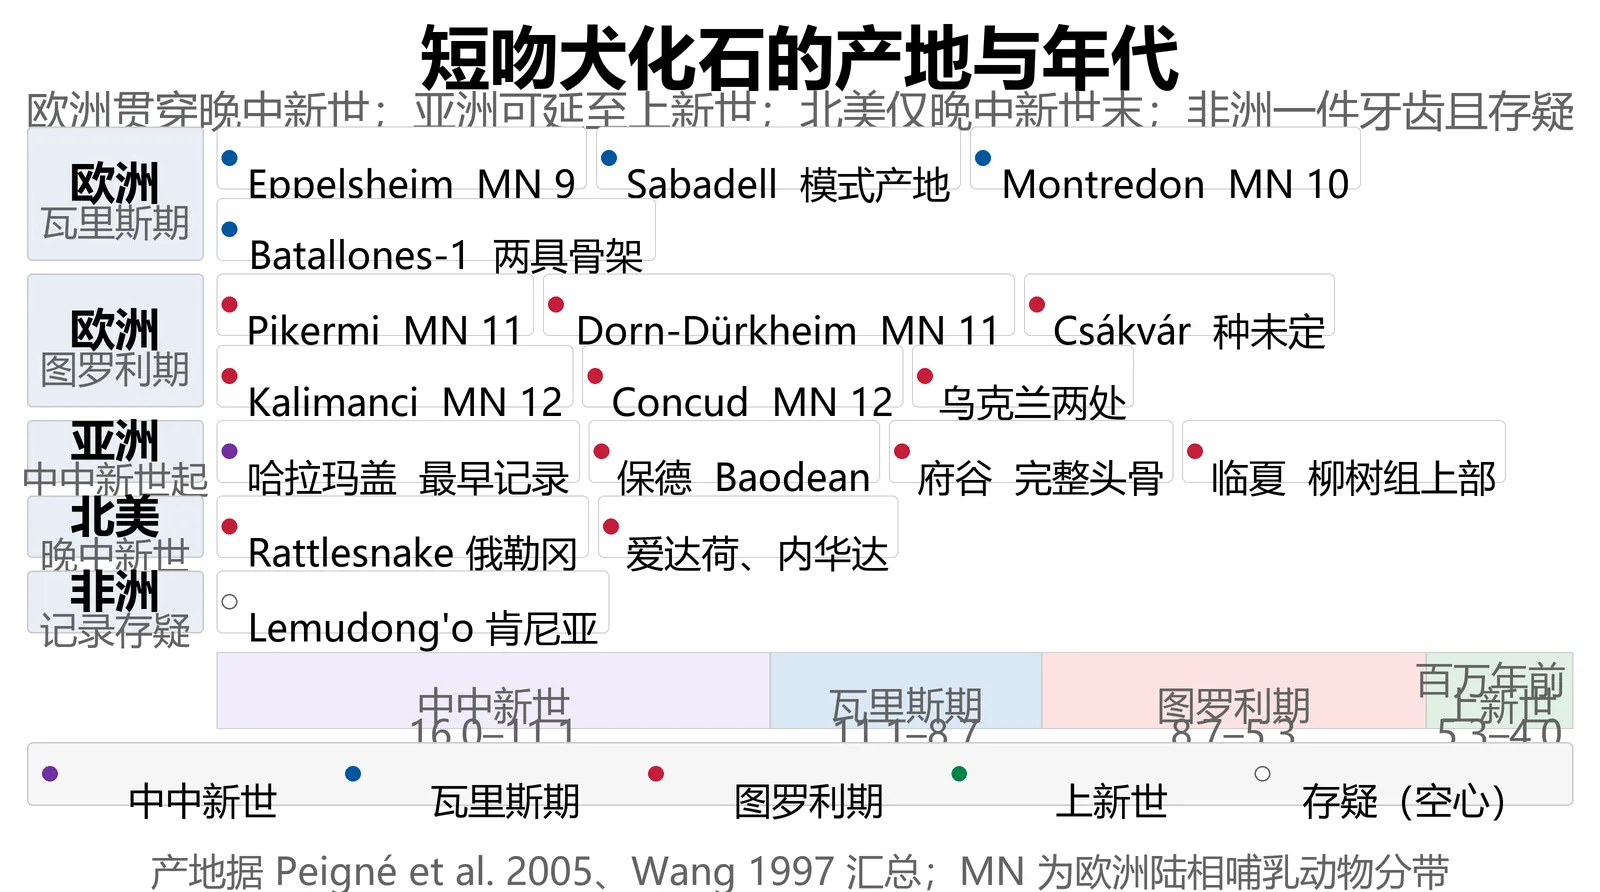
图8 短吻犬化石的产地与年代,产地据Peigné et al. 2005、Wang 1997、Wang et al. 1998、Howell & Garcia 2007与邓涛等2004汇总,MN为欧洲陆相哺乳动物分带
中国的材料值得单独一说。1997年,王晓鸣描述了陕西北部一件保德期的完整头骨,正是它第一次确立了两个亚科的姊妹关系。这件头骨保留了欧洲材料里早已丢失的P2与p2至p3——同一属内,齿数在不同大陆上走出了不同的路。更早的记录在新疆:哈拉玛盖组的中中新世层位里,与Simocyon小种一同发表的还有Alopecocyon goeriachensis,短吻犬亚科的另一属。一早一晚两件材料前后相续,把中国的化石变成欧洲序列里缺失环节的补白,一段段填了回来。
2025年,小熊猫科的内部框架又做了一次调整。马德里盆地八个中中新世(MN5至MN6)产地的新材料,让只靠一枚m2立属的Magerictis imperialensis第一次有了颅骨与颅后骨骼的描述。据此完成的系统发育分析把小熊猫科划成三个亚科:最基部是Magerictinae,只有Magerictis与新属Rothictis;中间的Simocyoninae收进Simocyon、Protursus、Alopecocyon与Actiocyon四属;最特化的一支是Ailurinae,Parailurus、Pristinailurus与现生小熊猫Ailurus并列。短吻犬属不在树梢,而在中段——它与树梢之间隔着整个小熊猫亚科。同一项研究还把Amphictis与Bonisictis移出小熊猫科,重新起用Amphictidae科名。三个亚科的划分,重新界定了小熊猫科的成员范围。
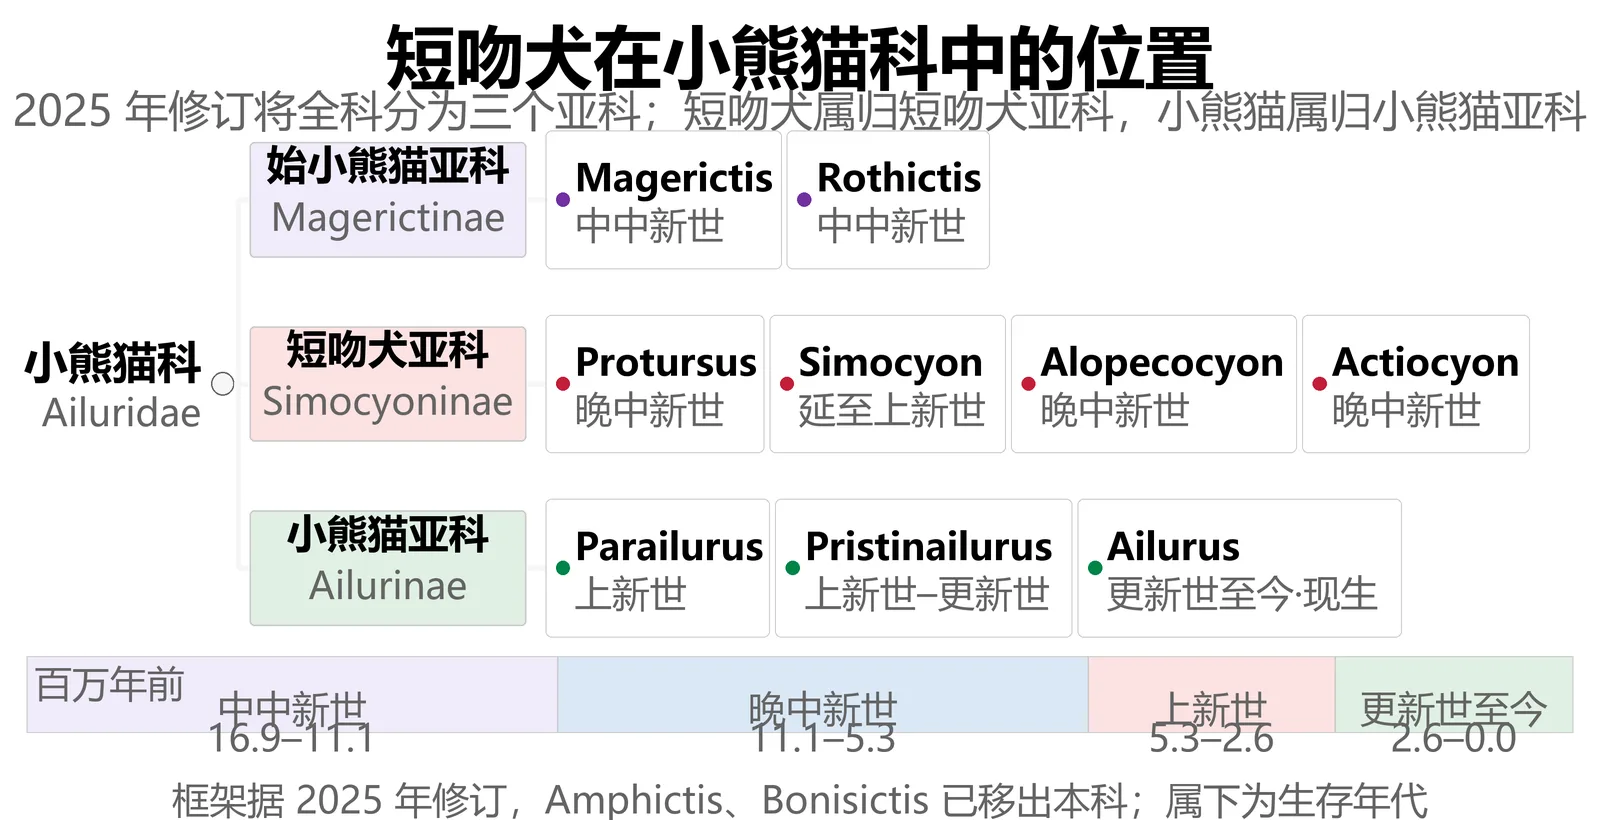
图9 小熊猫科的三亚科框架,据Morales et al. 2025修订绘制,短吻犬属归短吻犬亚科,与现生小熊猫所在的小熊猫亚科分立
这一属的终局并不整齐。欧洲止于图罗利期末,北美止于晚中新世末。中国是例外,就现有记录看,短吻犬属在这里从保德期延续到榆社期,跨进上新世,成为全属最晚的踪迹。关于它消失的原因,没有单一答案:晚中新世末,欧亚大陆的动物群整体换血,三趾马动物群扩张,气候季节性增强;一种美洲狮大小、以剪切齿系为业的半树栖食肉兽,在林地退向草地的进程里大概两头都占不住。同科的小熊猫亚科活到了今天,靠的是把食谱改写成竹子;短吻犬守着剪切齿系与半树栖的习性,没有跟上这次变化。
回头看,这个名字错得很有层次。第一层在属名:Simocyon的意思是短吻的狗,它确实吻短,却属小熊猫科,与狗相去甚远。第二层在种名:模式种的种名primigenius意为最初的,如今已知并不是最早的种——早瓦里斯期的diaphorus比它早上200多万年。第三层在科名:小熊猫科里没有熊猫,大熊猫是熊科,熊猫这个名字反倒是从小熊猫借去的;而曾经撑起这个科的,是遍布三洲的短吻犬。三层错位叠在一起,一条1858年的属名,装进了一部一百七十年的分类史。
错误的名字未能更改,但骨头却明白无误地记载了它的身份。1858年,瓦格纳用两个希腊词根拼出短吻的狗;2006年,同一副腕骨里的籽骨把答案改成小熊猫的亲戚。两者相隔一百四十八年,其间是一串被推翻的科属归属,也有三块大陆上的发掘工作。这一百多年里,它的归属在犬科、犬熊科、鼬科、浣熊科与小熊猫科之间来回搬家,每一次搬家都在修正前一个判断,而名字始终没有跟着改。短吻犬早已走完自己的路,只剩名字还留在文献里,替一部分类史作证。
参考资料
- [1] Wang X.New cranial material of Simocyon from China, and its implications for phylogenetic relationship to the red panda (Ailurus).Journal of Vertebrate Paleontology, 1997, 17(1): 184–198.(https://doi.org/10.1080/02724634.1997.10010963)
- [2] Peigné S, Salesa M J, Antón M, Morales J.Ailurid carnivoran mammal Simocyon from the late Miocene of Spain and the systematics of the genus.Acta Palaeontologica Polonica, 2005, 50(2): 219–238.(http://app.pan.pl/acta50/app50-219.pdf)
- [3] Salesa M J, Antón M, Peigné S, Morales J.Evidence of a false thumb in a fossil carnivore clarifies the evolution of pandas.Proceedings of the National Academy of Sciences, 2006, 103(2): 379–382.(https://doi.org/10.1073/pnas.0504899102)
- [4] Salesa M J, Antón M, Peigné S, Morales J.Functional anatomy and biomechanics of the postcranial skeleton of Simocyon batalleri (Viret, 1929) (Carnivora, Ailuridae) from the late Miocene of Spain.Zoological Journal of the Linnean Society, 2008, 152(3): 593–621.(https://doi.org/10.1111/j.1096-3642.2007.00370.x)
- [5] Morales J, Abella J, Caballero Ó, DeMiguel D, Peláez-Campomanes P, Valenciano A.The enigmatic ailurid Magerictis imperialensis (Mammalia: Carnivora) unveiled: a systematic approach to the early Ailuridae.Journal of Systematic Palaeontology, 2025, 23(1): 2571254.(https://doi.org/10.1080/14772019.2025.2571254)
- [6] Howell F C, Garcia N.Carnivora (Mammalia) from Lemudong'o (late Miocene: Narok District, Kenya).Kirtlandia, 2007, 56: 121–139.(https://www.lesleahlusko.org/wp-content/uploads/2016/04/kirt-56-00-121.pdf)
- [7] Wang X, Ye J, Meng J, Wu W, Liu L, Bi S.Carnivora from middle Miocene of Northern Junggar Basin, Xinjiang autonomous region, China.Vertebrata PalAsiatica, 1998, 36(3): 218–243.(https://www.ivpp.cas.cn/cbw/gjzdwxb/xbwzxz/200812/W020090813369598446443.pdf)
- [8] 邓涛,王晓鸣,倪喜军,刘丽萍,梁忠.临夏盆地的新生代地层及其哺乳动物化石证据.古脊椎动物学报,2004,42(1):45–66.(http://ivpp.cas.cn/cbw/gjzdwxb/xbwzxz/200810/W020090813368445368539.pdf)
- 图片来源与说明
- 图1、图2、图4、图5、图6 为论文图版照片,引自 Peigné et al. 2005(Acta Palaeontologica Polonica 50(2): 219–238,开放获取期刊),标本分别为 MNCN B-3620(腹视)、MNCN B-3458(背视)、MNCN B-3620(上齿列)、MNCN BAT-1-D7-7-2001(右下颌)与 MNHN-PIK 3020 加 MNCN BAT-1-D7-7-2001(两件下颌对比);图3 体型对比据 Roman Uchytel 的复原图裁切,原角标署名替换为本文标签;图7、图8、图9 为本文据 Salesa et al. 2006、Peigné et al. 2005 与 Morales et al. 2025 自绘。文中年代与产地信息取自上述文献;MN 为欧洲陆相哺乳动物分带;齿系数值据 Peigné et al. 2005 表 3;北美记录据 Howell & Garcia 2007 引 Tedrow et al. 1999 与 Baskin 1998;非洲莱姆东戈记录仅一件上臼齿, Howell & Garcia 2007 归为短吻犬属未定种。